Antes de que un óvulo pueda fertilizarse, el espermatozoide tiene que unirse y atravesar una capa exterior del ovocito conocida como zona pelúcida (ZP). Esta matriz glicoproteica translúcida rodea al ovocito de los mamíferos y se mantiene en el embrión preimplantacional hasta el estadio de blastocisto, observándose variaciones tanto en su estructura como en su funcionalidad a lo largo del desarrollo. La zona pelúcida protege al ovocito y al embrión antes de la implantación, controla las primeras divisiones celulares del embrión y retrasa la implantación hasta que el embrión llega al útero.
Composición y Formación
La zona pelúcida humana mide entre 5 y 10 μm de grosor y está compuesta por cuatro glicoproteínas principales, designadas como ZP1, ZP2, ZP3 y ZP4. Estas proteínas presentan un patrón de glicosilación especie-específico que se considera fundamental para el reconocimiento gamético, la inducción de la reacción acrosómica y el bloqueo de la polispermia. Si bien las glicoproteínas de la ZP parecen ser secretadas coordinadamente por el ovocito durante la foliculogénesis, también hay evidencias en otras especies, incluida la humana, de que las células de la granulosa contribuyen a su producción.
A nivel molecular, en el modelo murino, que es bastante aceptado para la mayoría de los mamíferos superiores, ZP2 y ZP3 interactúan entre sí formando unidades heterodiméricas que se disponen periódicamente en filamentos largos. Estos filamentos parecen estar interconectados por ZP1, la proteína más voluminosa de la ZP del ratón. Así, se constituye una capa que separa el oolema de la región más interna del folículo, la corona radiata.
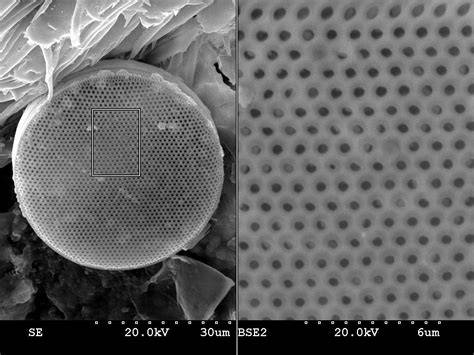
Estructura Subcelular y Análisis por Microscopía de Polarización
La disposición de los filamentos de la ZP le confiere una propiedad óptica denominada birrefringencia, lo que permite su análisis por microscopia de polarización (PolScope). Esta técnica es capaz de definir la estructura trilaminar que presenta la ZP.
- En el ovocito, los filamentos de la capa interna (capa 1) están orientados radialmente, mientras que los filamentos de la capa externa (capa 3) están orientados tangencialmente.
- Estas capas interna y externa están separadas por una capa intermedia (capa 2) que presenta una birrefringencia mínima, lo que sugiere una orientación aleatoria de los filamentos.
Tanto en el ovocito como en el embrión temprano, la capa más interna (capa 1) es la más gruesa y la que mayor retardancia exhibe, mostrando una mayor intensidad de brillo en el PolScope. La disminución del grosor general de la ZP de los embriones, que se sabe es más delgada en el estadio de blastocisto, se debe sobre todo a la disminución de la capa más externa (capa 3). Se han encontrado diferencias estadísticamente significativas en el grosor y la retardancia de la ZP entre ovocitos inmaduros y maduros, así como una disminución significativa en embriones en día 3.
Gracias al marcado de epítopos de las proteínas de la zona, se ha demostrado que las capas de la zona se establecen en secuencia temporal, con la capa interna colocada en último lugar.
Rol en la Fecundación
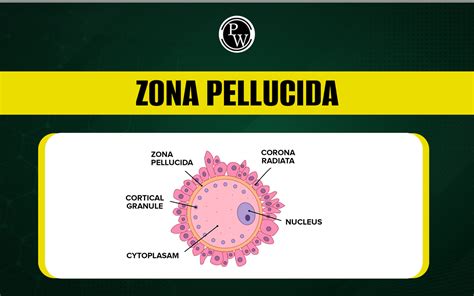
A pesar de décadas de investigación, algunos de los mecanismos biológicos involucrados en la unión del espermatozoide y el ovocito no están del todo claros. La zona pelúcida desempeña un papel crucial en la unión de los espermatozoides y la fertilización, ya que ZP3 y ZP4 sirven como receptores primarios de espermatozoides. Estos receptores se unen a proteínas específicas en la superficie del espermatozoide, lo que desencadena un proceso llamado reacción acrosómica.
Modelos de Reconocimiento Gamético
La investigación ha propuesto dos modelos principales para explicar la unión espermatozoide-ovocito:
- Modelo de liberación de glicanos (ZP3): Propone que los O-glicanos de Ser332 y Ser334 en ZP3 actúan como ligandos para un receptor de superficie del esperma. Esta unión induciría la reacción acrosómica.
- Modelo de escisión de ZP2: Postula que los espermatozoides se unen a un dominio N-terminal de ZP2. Estudios en ratones han demostrado que los espermatozoides de ratón no se unieron a la zona pelúcida si faltaba ZP2, y las ratonas hembras carentes de esta proteína eran estériles. Además, los espermatozoides no podían fecundar óvulos sin ZP2, y los espermatozoides humanos fueron capaces de unirse a la ZP únicamente en presencia de ZP2.
Aunque inicialmente se pensó que estos modelos eran contradictorios, existen explicaciones que apuntan a su complementariedad. Una posibilidad es que ZP2 y ZP3 formen un heterodímero, de modo que el espermatozoide de ratón se uniría primero a ZP3 mediante los glicanos, induciendo la reacción acrosómica. Solamente los espermatozoides que ya han reaccionado con el acrosoma se unirían posteriormente a ZP2.
Bloqueo de la Polispermia
Una vez que el primer espermatozoide se fusiona con la membrana plasmática del ovocito, se produce la reacción cortical. Esto da lugar a la liberación de enzimas (proteasas) de los gránulos corticales. Estas enzimas inducen cambios bioquímicos en la zona pelúcida, volviéndola resistente a la unión de más espermatozoides e impermeable a otros, un proceso denominado reacción de zona, que es esencial para evitar la polispermia.
Rol en el Desarrollo Embrionario Preimplantacional
Como el embrión está revestido por la ZP hasta poco antes de la implantación, todas las señales materno-embrionarias tienen que atravesarla. Durante el desarrollo embrionario, las proteínas segregadas por el oviducto y por el útero, así como las embrionarias, se incorporan a la zona pelúcida, cambiando sus propiedades morfológicas y bioquímicas. Se han reportado diversas moléculas que actúan durante la implantación, como la familia del factor de crecimiento epidérmico (EGF), la IL-1, la proteína 3 de unión al factor de crecimiento similar a la insulina (IGFBP 3) y el factor de crecimiento epidérmico de unión a la heparina (HB-EGF).
La ZP también actúa como un andamio físico que mantiene unidos a los blastómeros, evitando la gemelaridad monocigótica, mientras los complejos de adhesión célula-célula no están todavía bien desarrollados. Además, es fundamental para la diferenciación del trofoblasto, el primer epitelio en la embriogénesis, que depende de la hipótesis de polarización. Esta hipótesis establece que la diferenciación depende de interacciones adhesivas célula-célula en un polo y de una superficie libre donde tales interacciones no ocurren, adquiriendo propiedades de dominio de membrana plasmática apical.
Los embriones exentos de zonas se desarrollan bien in vitro hasta blastocistos, pero su desarrollo es muy pobre después de la transferencia al tracto genital femenino, a menos que hayan alcanzado la etapa tardía de mórula o blastocisto.
Eclosión Embrionaria (Hatching)
La eclosión o hatching embrionario es el proceso por el cual el embrión, ya en estadio de blastocisto, rompe la zona pelúcida y sale de ella para poder implantarse en el endometrio. Este proceso depende tanto de la acción mecánica y enzimática del blastocisto como de la actividad lítica uterina.
- Mecanismos in vitro: En condiciones de cultivo, la eclosión de los blastocistos tardíos se debe a su acción mecánica mediante series de contracciones y reexpansiones, que provocan el estiramiento y adelgazamiento de la ZP. La principal responsable es una dilatación local producida por algunas células del trofoblasto que se hunden en la ZP. Se ha propuesto la acción de proteinasas como la tripsina (Strypsin) y las catepsinas (como la catepsina V en blastocistos humanos) en el adelgazamiento de la ZP. La eclosión in vitro puede iniciarse con menos células embrionarias si se utiliza láser.
- Mecanismos in vivo: El escape de la zona pelúcida in vivo es diferente del proceso observado in vitro, ya que existe una contribución uterina mediante la producción de lisinas uterinas que ayudan a la disolución de la matriz glicoproteica. El menor número de células embrionarias detectadas en blastocistos libres de zona in vivo indica que el mecanismo subyacente no depende exclusivamente de la expansión del blastocisto.
En humanos, un estudio reciente observó que el 75% de los blastocistos morfológicamente normales no pueden abandonar la ZP espontáneamente en programas de reproducción asistida. Sin embargo, no se ha reportado una asociación entre la tasa de fallo de eclosión y el grosor de la ZP, lo que sugiere que la eclosión es una etapa caracterizada por un determinismo cronológico y, en gran medida, cronogenético.
Desarrollo embrionario hasta blastocito
Aplicaciones Clínicas e Investigación
Actualmente, la identificación de marcadores no invasivos para seleccionar los mejores gametos y/o embriones es un campo de investigación en auge en reproducción asistida. La tecnología de PolScope, al estimar la calidad del ovocito/embrión a través de las propiedades de la ZP humana, podría utilizarse como herramienta clínica no invasiva para seleccionar ovocitos y embriones de mayor calidad.
Por otro lado, también es de gran interés la búsqueda de nuevos tratamientos anticonceptivos. Se ha propuesto la inmunización contra la ZP como método anticonceptivo, aunque siguen siendo necesarias más investigaciones para esclarecer los posibles efectos secundarios no deseados.