La gastrulación es una fase importante en el desarrollo embrionario temprano de la mayoría de los animales, durante la cual la simple blástula se reorganiza en una estructura multicapa conocida como gástrula. Este proceso forma las capas germinales embrionarias de las cuales se desarrollarán todos los órganos y tejidos del organismo. La complejidad de células y tejidos que forman un cuerpo animal parte de una bola engañosamente simple de células madre embrionarias (CME), el embrión temprano.
Introducción a la Gastrulación: El Origen de las Capas Germinales
El desarrollo embrionario comienza en los animales con la división del óvulo fecundado y las sucesivas subdivisiones posteriores. En el resto de animales, tras la séptima subdivisión el embrión está formado por 128 células que se disponen en una capa y adopta forma esférica. Ese estado se denomina blástula, y en su interior hay una cavidad denominada blastocele que está llena de líquido o de vitelo.
A continuación se produce la gastrulación; algunas células migran hacia el interior y se disponen en dos capas, de manera que el embrión adopta la forma de un recipiente aproximadamente esférico que delimita una cavidad llena de líquido con una apertura al exterior. Esa configuración se denomina gástrula. Su capa externa es el ectodermo y la interna el endodermo.
Los animales diblásticos, como los cnidarios y ctenóforos, retienen este esquema básico a partir del cual desarrollan sus estructuras. En los más simples, como los cnidarios, el ectodermo da lugar a la epidermis y el endodermo a la gastrodermis. Aunque tienen diversos tipos celulares, estas capas pueden considerarse sus únicos tejidos, y en rigor no se puede decir que tengan órganos.
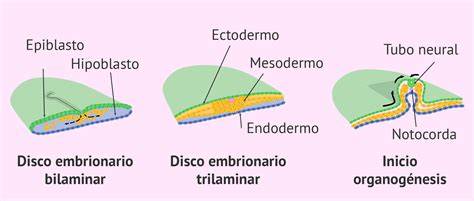
En los embriones del resto de animales se desarrolla una tercera capa a partir del endodermo que se dispone entre las otras dos: el mesodermo. Los animales con tres hojas blastodérmicas se denominan triblásticos, incluyendo a acelomados, pseudocelomados y eucelomados.
Aunque las etapas previas a la gastrulación son muy diferentes entre los mamíferos y el resto de los vertebrados, debido principalmente a diferencias en el proceso de segmentación, los mecanismos de desarrollo para establecer el futuro organismo siguen patrones muy similares una vez que se forma el disco embrionario y se inicia la gastrulación. Esto es un hecho relevante, denominado convergencia evolutiva, que indica la importancia del mecanismo de gastrulación.
Mecanismos Celulares de la Gastrulación
La gastrulación implica una serie compleja de movimientos celulares que incluyen la invaginación (movimiento de las células hacia adentro), la involución (rotación interna de las células), la delaminación (separación de una lámina celular en dos) y la epibolia (expansión de una lámina celular sobre otras células). Los mecanismos y patrones precisos de estos movimientos varían entre diferentes especies, pero el objetivo fundamental es posicionar las células embrionarias en las ubicaciones correctas para un desarrollo y diferenciación posterior.
Una vez formada la blástula, se produce un desplazamiento de células superficiales hacia el blastocele. Esto genera una invaginación y consecuente disminución del tamaño de la cavidad blastocélica, lo cual se logra mediante el ingreso de células por el blastoporo, en un movimiento parecido al de dar la vuelta a un calcetín. Al mismo tiempo que la cavidad blastocélica disminuye, surge una nueva cavidad llamada arquénteron o gastrocele, que más tarde se convertirá en el intestino.
El proceso de gastrulación ocurre de modo diferente según el tipo de huevo y su subsiguiente segmentación:
- En la mayoría de los filos animales, con segmentación holoblástica, la blástula tiene aspecto de una bola hueca (celoblástula) y la gastrulación ocurre por invaginación. Una parte de las células ectodérmicas se invagina hacia el blastocele para formar la segunda hoja embrionaria (endodermo) y delimitar el arquénteron.
- Cuando el huevo presenta una cantidad moderada de vitelo en el polo vegetativo, la segmentación produce grandes macrómeros vitelinos, haciendo que el blastocele sea más o menos virtual (estereoblástula) y la invaginación dificultosa.
- Si la cantidad de vitelo es tan grande que la segmentación es de tipo meroblástico, se forma un pequeño casquete de células o discoblástula, y la gastrulación se produce generalmente por involución. Este proceso consiste en que las células de la periferia del disco se hunden y se dirigen hacia atrás, bajo la capa superficial, formando un doble estrato.
- En algunos casos de estereoblástula, el endodermo se forma por migración de células ectodérmicas en vez de por división y migración, sin que se forme el blastoporo durante el proceso.
El Ectodermo: La Capa Externa Fundamental
El embrión vertebrado empieza como una esfera uniforme de células pluripotentes, que pronto se transforma -a través del proceso de gastrulación- en una estructura más compleja con tres capas de tipos celulares diferenciados. El ectodermo determina la capa más externa y superficial del embrión. Por ello, formará parte de las paredes que constituyen el espacio que rodea al embrión, como el saco amniótico.
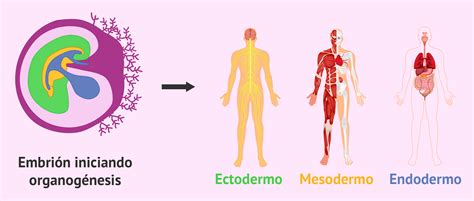
En fases precoces del desarrollo, las células del ectoblasto (epiblasto) inician dos procesos fundamentales de forma concomitante: se dividen y proliferan, e inmediatamente después, necesitan migrar y desplazarse hacia nuevas localizaciones para ocupar nuevas posiciones en el embrión. Estos procesos celulares hacen que numerosas células del epiblasto se dirijan hacia el hipoblasto, desplazando sus células para ser sustituidas por una nueva capa celular, el endodermo. El inicio del proceso de gastrulación se caracteriza por los cambios morfogenéticos que tienen lugar en el embrión, ya que las células del ectodermo se dividen y migran para formar la tercera capa, el mesodermo. Las células ectodérmicas, con gran capacidad de proliferación, están sometidas a diferentes corrientes de migración celular, fundamentalmente en sentido látero-medial y rostro-caudal.
Diferenciación del Ectodermo: Formación del Sistema Nervioso y Tegumento
Del ectodermo derivan principalmente las células del tegumento y del sistema nervioso. Hay quince tipos celulares del sistema tegumentario, la mayoría de ellas células epiteliales queratinizantes. Las células del sistema nervioso son mucho más numerosas; se incluyen las transductoras (que convierten información sensorial en potenciales eléctricos de membrana), las células del sistema nervioso autónomo (colinérgicas, adrenérgicas y peptidérgicas), y aquellas que dan soporte a sistemas receptores o a neuronas del sistema periférico. A este gran grupo pertenecen también las neuronas y células gliales del sistema nervioso central, con una gran variedad y cuyo número podría rondar los veinticinco. Además, se consideran los dos tipos celulares del cristalino.
Uno de los cambios morfogenéticos más precoces es la diferenciación del ectodermo neural. Alrededor de la tercera semana de gestación se inicia el desarrollo del sistema nervioso, en un proceso denominado neurulación. Este proceso incluye la formación de la placa neural y los pliegues neurales, y su cierre para formar el tubo neural, aproximadamente hasta la cuarta semana del desarrollo.
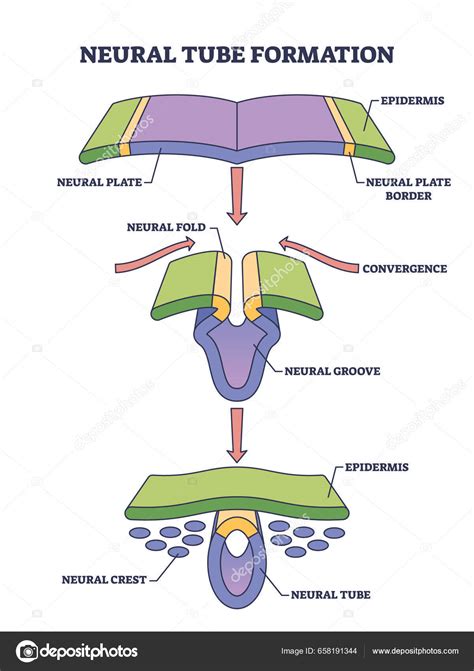
La placa neural se constituye mediante un engrosamiento del ectodermo que se relaciona en principio con el nódulo de Hensen y posteriormente con el mesodermo axial, la notocorda, prolongándose en sentido cráneo-caudal. Posteriormente, la placa neural se invagina a lo largo de su eje longitudinal para formar el canal neural y seguidamente el surco neural, con los pliegues neurales a cada lado. Los pliegues neurales se aproximan tanto que el surco neural llega a cerrarse progresivamente, constituyendo el tubo neural.
El tubo neural dará origen al sistema nervioso central: encéfalo y médula espinal. La luz del tubo neural, el conducto neural, formará las cavidades ventriculares y el conducto ependimario, respectivamente. Cuando está finalizando el cierre del neuroporo rostral, el segmento de tubo neural más craneal (rostral al nivel del cuarto par de somites) es donde tiene lugar el desarrollo del encéfalo. Inicialmente, este sector del tubo determina un proceso morfogenético caracterizado por la formación de las tres vesículas cerebrales primarias: prosencéfalo (cerebro anterior o rostral), mesencéfalo (cerebro medio) y rombencéfalo (cerebro caudal). Estructuralmente, la pared del tubo neural se compone de neuroepitelio cilíndrico pseudoestratificado, grueso, que evoluciona según se configure la estructura histológica.
Coordinación e Interacción de las Capas Germinales
Cada una de las tres capas germinales da lugar a un conjunto específico de tipos celulares. Es de especial relevancia tener en cuenta que el desarrollo de cada capa es coincidente y concomitante en el tiempo con el desarrollo de las dos capas restantes; las tres capas se desarrollan simultáneamente. Además, durante el proceso morfogenético de cada una, existen importantes interacciones tisulares, celulares y moleculares entre los diferentes componentes, de tal modo que los procesos que ocurren en una determinada capa embrionaria repercuten en el desarrollo de las demás.
Regulación Genética de la Especificación de Linajes
La forma en que las células madre embrionarias pierden su pluripotencia y se diferencian en linajes específicos es uno de los misterios de la biología del desarrollo. El embrión vertebrado empieza como una esfera uniforme de células pluripotentes, que pronto se transforma en una estructura más compleja con tres capas de tipos celulares diferenciados. Primero, ocurre la salida de pluripotencia, donde las CME pierden la capacidad para convertirse en cualquier tipo de célula. Segundo, se da la especificación del linaje, donde las CME se diferencian en células del ectodermo, el mesodermo o el endodermo.
Investigaciones han encontrado que la salida de pluripotencia y la especificación de la capa germinal pueden sobreponerse en el tiempo, en lugar de pasar una después de la otra. Se ha identificado el factor Whsc1, una metilasa de histonas, como actor crítico en este proceso. Cuando se inhibe Whsc1, las células madre embrionarias del ratón no se pueden diferenciar de manera eficiente en células del mesendodermo (aunque el ectodermo no se ve afectado), y la salida de pluripotencia se retrasa. Whsc1 se une a los elementos reguladores de los genes «maestros» de linaje como Gata4, T (Brachyury), Gata6 y Foxa2 y los activa, dando lugar a una especificación de células germinales. Este descubrimiento desafía el antiguo concepto de que las células pluripotentes deben olvidar su identidad antes de poder cambiarla.
Desarrollo del Mesodermo y su Interacción
La notocorda, originada a partir de la migración rostro-caudal de las células epiblásticas más craneales del embrión, se extenderá a lo largo de todo el embrión, a excepción de la zona más rostral. La notocorda tendrá un papel fundamental en los procesos de inducción neural sobre la capa ectodérmica suprayacente. Experimentos clásicos han demostrado que la extirpación de la notocorda conduce a una ausencia de diferenciación del ectodermo neural, mientras que su implantación experimental induce la diferenciación de regiones ectodérmicas neurales adicionales.
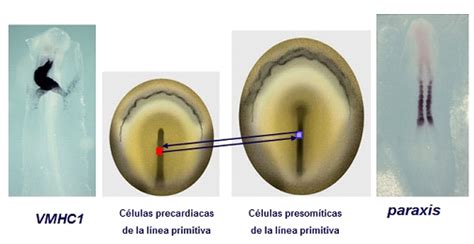
El mesodermo para-axial se caracteriza por su división progresiva en sentido céfalo-caudal, estableciendo pares de acúmulos celulares localizados a cada lado de la notocorda, formando los somites. Los somites se diferencian en dermotomo (que se relaciona íntimamente con el ectodermo y forma la dermis de la piel), esclerotomo (que da lugar a estructuras cartilaginosas y óseas como costillas y vértebras) y miotomo (destinado a la formación de estructuras musculares).
El mesodermo lateral se divide en dos capas: la hoja somatopleura (superficial, en relación con el ectodermo) y la hoja esplacnopleura (profunda, en relación con el endodermo). Cada hoja de mesodermo lateral se fusionará con la del lado opuesto a nivel de la línea media, formando el cuerpo embrionario tridimensional. El mesodermo delimita junto con el mediastino una cavidad o celoma.
Derivados del Endodermo
A partir del endodermo surgen las células secretoras epiteliales de las glándulas exocrinas (como las glándulas salivares, lacrimales, sudoríparas y las del estómago) y los tipos celulares que producen hormonas (endocrinas), incluyendo las de la pituitaria anterior, tractos respiratorio e intestinal, glándulas tiroides, paratiroides y adrenal, o los islotes de Langerhans del páncreas. Esta capa embrionaria, en íntima relación con el saco vitelino, da lugar a la constitución del tubo endodérmico, que recorre el embrión longitudinalmente desde la boca primitiva hasta el ano.
La Complejidad Celular como Indicador de Desarrollo
A modo de resumen, en los seres humanos se puede decir que hay más de sesenta tipos celulares de procedencia endodérmica, más de setenta de procedencia ectodérmica y más de ochenta de procedencia mesodérmica. En conjunto, los seres humanos tenemos más de doscientos veinte tipos celulares. Es muy posible que esa cifra sea muy similar en el resto de primates y, hasta donde sabemos, ningún otro grupo animal presenta tal diversidad celular o diversificación de funciones, lo que a menudo se interpreta como una mayor división del trabajo.
Hay autores que consideran la diversidad de tipos celulares como un buen indicador de complejidad. Si aceptamos que la división del trabajo proporciona una mayor eficacia, se podría considerar que las especies con mayor diversidad celular exhiben una mayor eficacia biológica.